研究
疼痛与心理社会因素
2026年5月29日
Immune Control of Pain and Exploration of Underlying Physiological Mechanisms - A Dive Into Theoretical Considerations to Guide the Physiotherapy Approach
这篇叙述性综述探讨了在疼痛情境下多种免疫因素的作用
它的目标是为物理治疗师提供病理生理学方面的洞见,从而加深你对疼痛机制的理解
该综述强调:在疼痛发生、感觉敏化以及最终缓解的过程中,多个免疫相关成分都具有重要意义
导言
理疗师有时可能会对患者未能缓解的疼痛感到应对压力很大,而保守治疗对患者主诉的改善效果也往往只有中等程度。 我们对疼痛与功能障碍的理解,主要基于疼痛驱动因素与功能障碍模型,这一模型使我们能够更好地理解不同的促成因素。 随着认知—情绪驱动因素在疼痛治疗方案中的关注度越来越高,临床医生可能因此会在慢性疼痛的情境下忽视伤害感受(nociceptive)相关的内容。 本综述旨在为理疗师提供易于获取的基础知识,帮助你理解并扩展对疼痛的免疫控制的临床认知与视角。
方法
这篇叙述性综述发表在《Joint Bone Spine》国际同行评审期刊上。
成果
疼痛分级
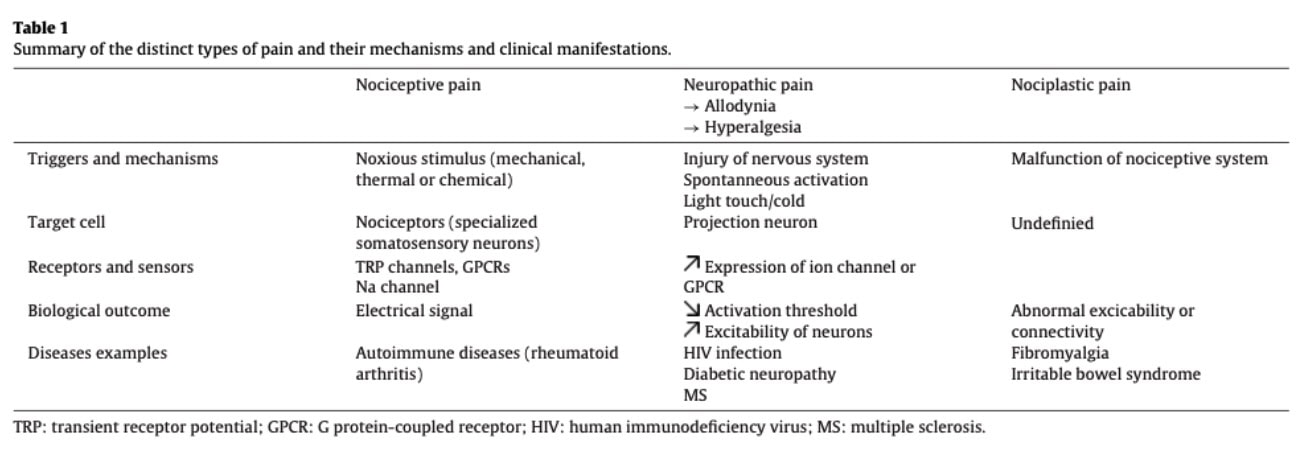
伤害感受性疼痛源于外周伤害感受器在局部组织环境发生变化时被激活。 伤害感受器会表达多种分子感受器,包括瞬时受体电位(TRP)通道、G蛋白偶联受体(GPCRs)以及电压门控钠通道,它们能够感知机械刺激、化学刺激和热刺激。 一旦被激活,它们就会将电信号传递给中枢神经系统。
免疫细胞可能会参与某些慢性疾病中炎症信号的持续,从而延长伤害感受器(nociceptor)的敏化。 在类风湿关节炎等疾病中,即使明显的炎症活动有所下降,疼痛仍可能持续存在,这凸显了 免疫对疼痛的调控与伤害感受信号之间的复杂相互作用。
神经病理性疼痛由躯体感觉神经系统的损伤或疾病引起,从而改变其功能。 常见情况包括多发性硬化和糖尿病周围神经病变。 它常表现为痛觉异常(由平时不会引发疼痛的刺激诱发疼痛)以及痛觉过敏(对有害刺激的疼痛反应被夸大)。 由于受累神经中持续存在的结构性和分子层面的改变,神经病理性疼痛可能会发展为慢性。
中枢性疼痛(nociplastic pain)是指在缺乏明确组织损伤或躯体感觉系统病变证据的情况下,因疼痛性信息处理发生改变而产生的疼痛。 这篇论文并未进一步阐述该类疼痛表型。 例如纤维肌痛,以及部分慢性腰痛的表现形式,通常与中枢性疼痛机制相关。
这篇论文强调了疼痛免疫调控的贡献。 虽然疼痛在过去通常被认为主要是神经系统的过程,但越来越多的证据表明,免疫机制在疼痛调节中发挥关键作用。
免疫细胞:疼痛调控者
已经发现,不同类型的免疫细胞都会参与疼痛机制。
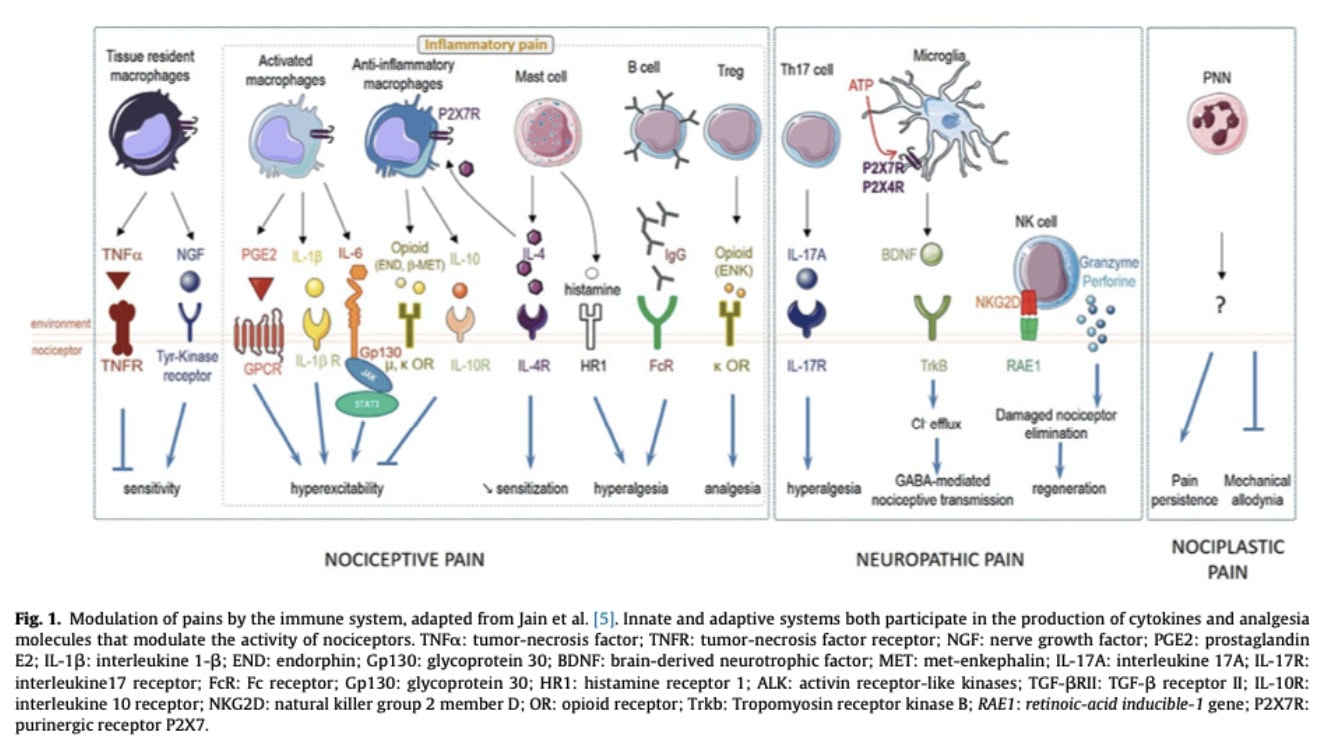
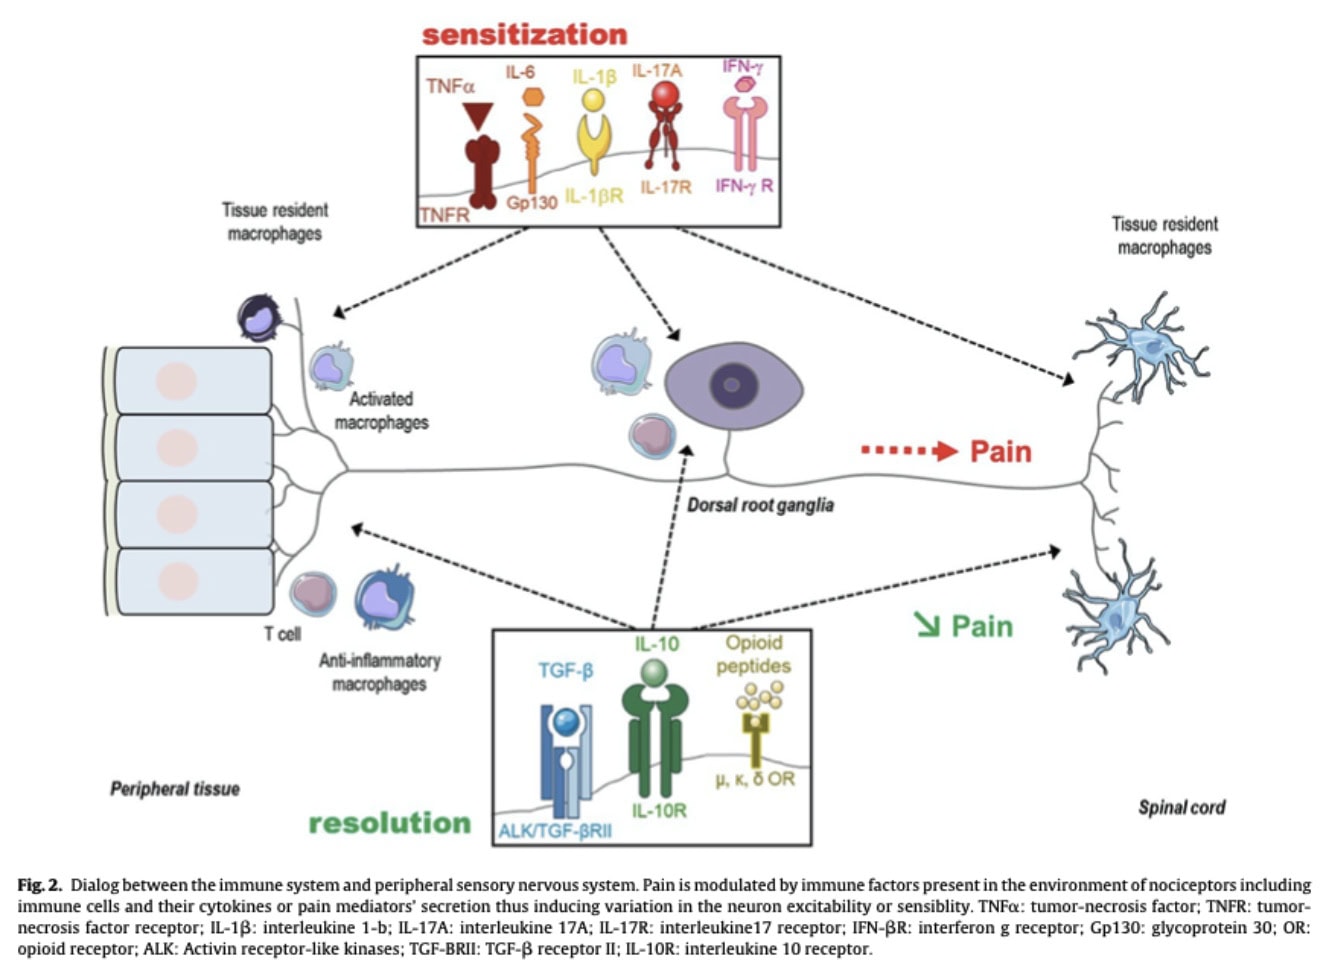
巨噬细胞是一类高度可塑性的免疫细胞,可呈现一系列激活状态;通常会将其简化为促炎与促修复的表型(类似 M1 和 M2)。 在组织损伤之后,它们会释放如 IL-1β、TNF-α、IL-6 以及趋化因子等介质,从而促进痛觉感受器(伤害感受器)致敏并引发炎症性疼痛。
在消退期,巨噬细胞会转向促消炎/促分辨(pro-resolving)的表型,从而减少炎症信号,并促进组织修复。 它们还可能释放内源性阿片肽,这些肽可激活伤害感受器(nociceptors)上的阿片受体,从而有助于外周镇痛。 此外,由巨噬细胞产生的 IL-10 有助于把炎症控制在可限范围内,并支持疼痛的缓解。
巨噬细胞与伤害感受器(nociceptors)之间存在双向交流。 伤害感受器来源的介质(如 CGRP、P 物质以及趋化因子,包括 CCL2)可以调节巨噬细胞的募集以及激活状态。 这种神经免疫互作可在不同的炎症环境下,增强或缓解疼痛;同时,这种互作的失调也被认为与慢性疼痛持续有关。
小胶质细胞是中枢神经系统的常驻免疫细胞,通常被描述为中枢神经系统内驻留的、类似巨噬细胞的细胞。 在神经系统损伤或应激之后,细胞外 ATP 会释放出来,并激活小胶质细胞上的嘌啉能受体,例如 P2X4 和 P2X7。
这种激活会促进小胶质细胞释放多种介质,包括脑源性神经营养因子(BDNF)。BDNF 会作用于脊髓投射神经元,并调节它们的兴奋性。 这会促进疼痛通路内的神经元致敏,并在神经病理性疼痛的发生与维持中发挥关键作用。
T细胞被越来越多地认为是重要的疼痛调节者,属于适应性免疫细胞。 不同亚群承担不同功能,尤其是CD4+ T辅助细胞,它们可以通过产生IFN-γ和IL-17等细胞因子来参与疼痛过程,同时也会释放包括granzyme和perforin在内的细胞毒性介质。 研究表明,IL-17可促进机械性痛觉过敏;在动物模型中对其进行中和可降低疼痛敏感性。这提示IL-17在如关节炎等炎症性疾病中具有重要意义。
除了促伤害性(pro-nociceptive)的作用外,CD4+ T 细胞还参与疼痛调节。T 细胞缺乏会损害内源性镇痛机制,包括通过阿片类(opioid)介导的疼痛控制。
T 细胞还会通过表达针对神经元神经肽的受体,参与双向的神经—免疫交流。 例如 P 物质和降钙素基因相关肽(CGRP)这类神经肽,可以影响 T 细胞的分化,并促进促炎表型(如 Th17),从而参与疼痛致敏。
B细胞是抗体细胞(免疫球蛋白)。 特定的B细胞,称为免疫球蛋白G,可能参与神经病理性疼痛。 在小鼠以及慢性疼痛患者的背根中,发现免疫球蛋白G水平升高。 另一方面,耗竭免疫球蛋白G可在小鼠中阻止痛觉异常(allodynia)。 免疫球蛋白G(IgG)可通过Fcγ受体信号传导促进伤害感受性致敏,该受体在伤害感受性传入神经纤维上有表达。 这一机制可能在炎症性和自身免疫性疾病中增强疼痛敏感性;在某些实验模型中,它也可以在没有明显组织损伤的情况下独立促进疼痛。 因此,针对抗体介导的免疫机制,可能是类风湿关节炎等疾病的一种有前景的策略。
中性粒细胞是先天免疫系统的早期反应者,具有很强的炎症作用。 它们在疼痛中的作用取决于具体情境。 在急性疼痛中,中性粒细胞减少往往并不影响疼痛敏感性,这提示急性疼痛主要由直接的伤害感受器激活以及早期炎症介质驱动。 在慢性疼痛模型中,中性粒细胞可能浸润感觉神经节(例如背根神经节),从而参与维持疼痛高敏感。 不同的中性粒细胞表型很可能产生不同的功能效应。 临床上,从急性腰背痛中恢复的患者,其循环中的中性粒细胞水平通常会在早期较未发展为慢性疼痛者出现上升,提示早期免疫反应可能在疼痛缓解过程中发挥作用。
自然杀伤(NK)细胞属于先天免疫系统的一部分。 它们的作用是识别异常或受损细胞,并促使其被清除。 研究已确定NK细胞对坐骨神经痛的潜在贡献:在轴突损伤之后,碎屑会在神经环境中堆积,NK细胞参与清除,从而促进健康的再生微环境。 NK细胞也可能通过靶向高兴奋性神经元、功能异常的支持细胞,以及持续的炎症驱动因素,发挥调节作用。 这些发现提示,NK细胞或许值得关注,以便更好地理解,并有可能调控持续性疼痛状态。
肥大细胞 分布在外周神经末梢附近,能够通过释放组胺、细胞因子和蛋白酶等促炎介质来参与疼痛调控。 这些物质会激活伤害感受器,并促进疼痛通路的致敏。 肥大细胞还会招募先天免疫细胞,从而放大炎症级联反应,并进一步增强外周致敏。
外周致敏
外周致敏是指伤害或炎症后,痛觉感受器(nociceptors)的反应性增强,并且其激活阈值降低。 受损组织细胞、常驻免疫细胞以及被募集的免疫细胞会释放炎症介质,例如 TNF-α、IL-1β、IL-6、前列腺素和趋化因子。它们可直接或间接作用于痛觉感受器,使其兴奋性升高,并放大疼痛信号传递。
神经免疫通路
免疫细胞会通过分泌细胞因子和炎症介质来调节伤害感受器(nociceptor)的活性,包括 IL-1β、IL-6、IL-17、IFN-γ、前列腺素 E2(PGE2)、组胺以及趋化因子。 相反,神经系统也可以通过释放如 CGRP 和P物质(substance P)等神经肽来调节免疫活动,从而影响免疫细胞的募集与活化。 这种双向沟通会促进疼痛的放大或帮助疼痛缓解。
中枢敏化
持续的外周伤害性感受输入可能会引起中枢神经系统的高兴奋性,尤其是脊髓背角的神经元以及上位的疼痛处理相关区域。 这一过程被称为中枢敏化。它与疼痛感知被放大、痛觉异常(痛触觉)、全身范围的疼痛以及组织愈合之后仍持续存在的疼痛有关。
免疫对中枢致敏的贡献
免疫细胞能够通过包含小胶质细胞活化、细胞因子释放,以及对神经元离子通道和受体的调节等机制,参与中枢致敏。 例如,小胶质细胞可通过如 P2X4 和 P2X7 这类嘌呤能受体感知细胞外 ATP,从而释放多种介质,其中包括脑源性神经营养因子(BDNF)。BDNF 会增强神经元兴奋性。 慢性疼痛同样可能通过激活下丘脑—垂体—肾上腺轴以及交感神经系统,改变免疫功能;这或许会促成免疫反应失调,并削弱内源性疼痛调制能力。
免疫识别
免疫感知(immunoception)指的是中枢神经系统监测并调节免疫活动的能力。 神经元会表达能够识别炎症信号的受体,包括TNFR这类细胞因子受体,以及TLR4这类模式识别受体。 通过这些机制,中枢神经系统可以感知免疫被激活,并据此调整行为、代谢以及生理反应。
免疫图谱
免疫神经图谱(immunengram)指一种被提出的神经表征或对既往免疫状态的记忆痕迹,它在中枢神经系统与外周免疫组织之间进行分布。 这一概念提示:免疫经验的编码可能不只发生在免疫细胞之内,还可能体现在参与神经—免疫通信的神经网络中。 这一新兴范式或许有助于解释神经活动如何影响免疫调节,并可能与自身免疫性疾病过程的发生有关。
免疫自我调节与疼痛缓解
尽管许多免疫细胞参与疼痛致敏以及伤害感受性调制,但免疫系统同样具备内源性调控机制,参与炎症与疼痛的消退过程。 因此,免疫细胞可能在不同的生物学情境、时间进程以及微环境条件下,产生促伤害感受或抗伤害感受的作用。
免疫系统对急性痛觉传入的贡献
尽管伤害感受性疼痛出现得很快,主要由神经元的激活介导,但免疫来源的信号也会参与伤害感受器(nociceptors)的调控。 例如神经生长因子(NGF)这类分子,由免疫细胞和组织细胞产生,会通过调节伤害感受器的激活阈值和兴奋性,产生持续性的致敏效应。 缺乏NGF与对疼痛刺激的敏感性降低相关,这强调了免疫信号即使在急性伤害感受中也发挥了作用。 肿瘤坏死因子α(TNF-α)的信号通路也参与伤害感受性疼痛的调控。 在缺乏TNF-α信号的情况下,伤害感受器对NGF的敏感性会增加,并出现异常的轴突生长,从而导致疼痛反应增强。
促炎与抗伤害感受免疫介质
免疫细胞会释放大量细胞因子和介质,这些物质会直接影响伤害感受器(nociceptor)的兴奋性以及疼痛调制。 像 IL-1β、IL-6、TNF-α 和 IL-17 这类促炎细胞因子,会促进伤害感受器致敏,从而推动炎症性疼痛;而抗炎细胞因子(包括 IL-10、IL-4 和 TGF-β)则发挥镇痛作用。 IL-10 可以直接作用于伤害感受器以减轻疼痛信号;而 IL-4 则能抑制伤害感受器致敏,并促进巨噬细胞产生内源性阿片类物质
调节性 T 细胞与慢性疼痛的转归
从急性疼痛转变为慢性疼痛,可能在一定程度上取决于免疫调控机制,尤其是那些涉及调节性T细胞(Tregs)的机制。 Tregs 通过抑制效应免疫细胞并分泌抗炎细胞因子,来抑制过度的炎症反应。 在坐骨神经损伤的实验模型中,研究发现小剂量 IL-2 给药可减轻痛觉过敏(allodynia),提示其镇痛作用可能由 Treg 介导。 同样,有研究表明 TNFR2 激动剂能够减轻神经元损伤,缓解外周与中枢炎症,并在中枢神经系统内促进修复型免疫表型的形成。 这些结果支持:免疫调控在限制疼痛慢性化方面起着重要作用。
P2X7 受体与神经病理性疼痛
P2X7受体(P2X7R)是一种由ATP激活的离子通道,表达于免疫细胞,在炎症性疼痛和神经病理性疼痛的机制中起着重要作用。 激活P2X7R会促进炎症信号传导并促进细胞因子释放,尤其是IL-1β。 在神经病理性疼痛患者中,已观察到P2X7R表达上调以及IL-1β水平升高,这提示该通路可能参与慢性疼痛的病理生理过程。 这些发现进一步强化了神经免疫信号在疼痛致敏与持续过程中的重要性。
允许镇痛的微环境
除了直接调节伤害性感受器之外,免疫细胞还可能通过与其他免疫细胞的相互作用,以及塑造局部组织微环境,来参与疼痛的缓解。 某些免疫表型会促进抗炎与修复过程,从而营造一种“允许镇痛”的环境,帮助恢复,并减少慢性致敏的发生。 因此,免疫细胞与感觉神经元之间的动态相互作用,似乎在疼痛的放大与缓解中都至关重要。
问题与思考
理解疼痛背后的病理生理机制,对拓宽理疗师在疼痛管理方面的视角至关重要。 根据《疼痛残疾与驱动因素模型》,临床医生对伤害感受性与神经病理性机制的理解,对于指导预后以及治疗取向都很关键。 在“Talk nerdy to me”这一部分,我们还将讨论一些可帮助理疗师识别伤害感受性与神经病理性疼痛驱动因素的临床工具,并探讨它们可能与本综述中提出的疼痛免疫调控有关。
生物学基础模型基于一种机制性的生命体观:通过改变生理通路,能够减轻疼痛并改善功能。 尽管这种观点在疼痛科学领域做出了重要贡献,但它可能仍不足以充分解释慢性疼痛的复杂性。 疼痛是一种具身的、主观的体验,它源自一个复杂、动态的系统。在这个系统中,生物、心理和情境因素相互作用,因而无法被有意义地简化为彼此孤立的子系统。
在健康科学中,现象学有助于拓展这种更宏观的理解,它聚焦于个体的亲身体验。 正如文中所引作者所界定的: “现象学是一种哲学思潮,旨在从正在经历该体验的人的意识出发,观察并描述赋予该体验的意义” (https://doi.org/10.3917/rsi.081.0021). 在这一框架下,物理治疗实践尤其适合采用整合式、以患者为中心的路径。 临床接触的反复迭代特性,使得可以对患者的体验进行逐步探索,并共同建构出一套具有意义的治疗策略。
在这个语境下,理疗师并不只是一个试图把“功能障碍”修好的技术人员;相反,他/她是与患者共同参与协作过程的临床伙伴——将照护模式从“单向的垂直式”转向基于共同关系的治疗联盟。
跟我说说书呆子的事
本部分将讨论目前已可用的临床工具,可能帮助临床医生更好地理解“免疫对疼痛的控制”可能带来的作用。上述任何一项评估都尚未被验证为能够直接评估疼痛中神经-免疫驱动因素的特定状态或其精确贡献。相反,本部分旨在把理论性的神经-免疫概念与临床实践衔接起来:通过探讨某些临床发现,可能如何反映“免疫对疼痛的控制”发生改变
条件性疼痛调制
条件性疼痛调节(CPM)通过“疼痛抑制疼痛”这一现象来评估内源性下行抑制通路。 CPM 受损可能提示下行抑制控制不足,以及神经免疫调节发生改变。 从理论角度来看,这类发现或许反映抗炎细胞因子活性降低(例如 IL-10 和 TGF-β)、内源性阿片介导镇痛能力受损、调节性 T 细胞活动异常,以及持续的微胶质细胞激活,从而促成中枢致敏。
感觉功能检查
简单的感觉检查,包括轻触、针刺和热刺激,可能会提示痛觉异常(allodynia)或痛觉过敏(hyperalgesia)。 这些发现可能反映周围和/或中枢致敏过程。 从机制上看,炎症介质(包括 IL-1β、IL-6、TNF-α、前列腺素、组胺、NGF 以及趋化因子)会降低伤害感受器的激活阈值,并提高神经元兴奋性。 同时,涉及小胶质细胞激活、BDNF 释放、ATP-P2X4/P2X7 信号通路以及背角处理方式改变的疼痛免疫调控机制,也可能有助于放大的感觉反应和痛觉异常。
压力痛阈值
压痛阈值(PPT)测试,用于评估诱发疼痛所需的最低压力;它也可能间接反映伤害感受器致敏以及中枢痛觉放大的情况。 PPT 的局部降低,可能提示由炎症性细胞因子、神经肽、前列腺素和 NGF 介导的外周致敏;这些因素会作用于机械敏感性的伤害感受器。 更广泛的 PPT 降低(尤其是在远离症状、但并无症状的部位),可能提示中枢致敏以及中枢神经系统内伤害感受“增益”发生改变。
从神经免疫学的角度来看,弥漫性机械性高敏反应在理论上可能反映小胶质细胞的持续激活、细胞因子介导的背角神经元调制、下行抑制通路受损,以及涉及 IL-1β、TNF-α、IL-17 和 ATP 信号的持续神经免疫信号传导。
时序性总和(temporal summation)测试
时间总和(temporal summation)测试,用于评估在重复给予相同刺激的过程中,疼痛感知逐步增强的情况;它反映脊髓兴奋性以及疼痛促通(pain facilitation)的相关机制。 增强的时间总和,被认为与发生在背角(dorsal horn)水平的“易化/风-up(wind-up)”现象在临床上具有对应关系(clinical correlate)。
从理论上看,促进性的时间性总和可能反映持续的伤害感受输入,并叠加神经免疫驱动的脊髓神经元兴奋性放大。 可能的促成因素包括小胶质细胞活化、ATP-P2X4/P2X7 信号传导、BDNF 释放、细胞因子介导的突触传递调制,以及抑制性中间神经元功能降低。 IL-1β、TNF-α、IL-6 升高,以及由胶质细胞来源的介质,可能促进突触反应性增强,并维持中枢致敏。
自我填写的问卷
像 CSI 这类自评问卷,可能会通过评估广泛性疼痛和感觉过敏等症状,间接反映与神经免疫相关的疼痛机制;这些症状有时与中枢处理改变有关,包括小胶质细胞活性。 不过,作为一种自我报告工具,它仍然可能受到报告偏倚的影响。 尽管如此,它仍然是一个很有用的切入点,帮助你探讨疼痛对功能、活动以及日常生活的影响。
带回的信息
- 疼痛并不只是一种神经现象;它源于伤害感受器、免疫细胞以及中枢神经系统网络之间的持续相互作用,进而形成一个动态的神经-免疫系统。
- 免疫细胞是疼痛的主动调节者。它们不仅通过致敏过程发挥作用(例如细胞因子、NGF、ATP 信号传导),还会借助抗炎和促进修复的介质来推动疼痛的缓解(例如 IL-10、IL-4、内源性阿片类物质、调节性 T 细胞)。
- 中枢致敏(central sensitization)指的是在脊髓及脑-上位中枢的神经回路中发生的神经免疫放大过程,尤其体现在小胶质细胞的激活以及细胞因子/BDNF 信号通路上。
- 神经-免疫交流是相互的:免疫介质会影响伤害感受器,而神经元则通过神经肽和趋化因子主动调节免疫反应。
- 像 QST、PPT、时程性总和(temporal summation)、CPM 以及各类问卷这样的临床工具,未必能直接测量神经免疫活动,但它们可以在系统层面反映神经免疫活动的功能性后果。
- 因此,物理治疗的评估可以从基于机制的方式来理解疼痛表型——将感觉功能评估与疼痛的免疫调控相结合,并进行机制驱动的临床推理。
- 归根结底,疼痛应被理解为一种复杂的、会适应的、多维度的体验——它既需要机理层面的洞察,也需要把以患者为中心的临床整合真正落到实处。
参考资料
营养如何成为中枢敏化的关键因素 - 视频讲座
观看此片 免费视频讲座 关于营养与中枢敏感性,由 欧洲第一慢性疼痛研究专家乔-奈斯(Jo Nijs)。 患者应避免食用哪些食物可能会让你大吃一惊!